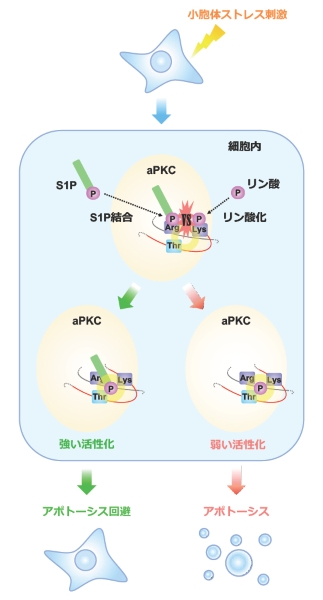
神戸大学大学院医学系研究科の梶本 武利助教らの研究グループは、カリフォルニア大学サンディエゴ校のアレキサンドラ ニュートン教授らとの国際共同研究により、生理活性脂質であるスフィンゴシン1-リン酸(S1P)※1 のリン酸基と、リン酸化修飾※2 を受けたプロテインキナーゼC(PKC)※3 のリン酸基の、空間的な競合が、小胞体ストレス※4環境下におけるアポトーシス※5 において、細胞の運命を決定づけるターニングポイントとなることを、立体構造シミュレーションおよび独自開発のPKC活性センサーにより明らかにしました。S1P結合とリン酸化がaPKC上の同じ領域を奪い合い、リン酸化が勝ると細胞はアポトーシスへ向かい、S1P結合が勝ると細胞はアポトーシスを回避し生存します。
本成果は、生理活性脂質が持つリン酸基とタンパク質が持つリン酸基との競合関係を、立体構造レベルで明らかにした点で革新的であり、今後、得られた構造情報を基にアポトーシスを制御する新たな分子標的薬※6 の設計が可能になると期待されます。
本研究成果は、米国東部時間2026年9月29日に、国際学術誌『Science Signaling』のオンライン版に掲載されました。
ポイント
- 小胞体ストレス依存性アポトーシスの新規メカニズムとして、S1P-aPKCシグナリングを同定。
- S1Pのリン酸基とリン酸化修飾を受けたaPKCのリン酸基による空間的なポジションの奪い合いが、aPKC活性化の運命を決定づけることを、立体構造レベルで解明。
- 小胞体ストレスによるアポトーシス誘導を制御する、新たな分子標的薬の開発に期待。
研究の背景
本研究グループはこれまでに、細胞内シグナリング※7におけるaPKCの新たな活性化機構として、S1Pの直接結合によるメカニズムを同定し、さらにこのS1P-aPKCシグナリングがアポトーシスのブレーキ役として機能することを明らかにしてきました。ただ、解明するべき問題提起として、1)S1P-aPKCシグナリングによるアポトーシスのブレーキはどの様な細胞環境で働くのか、2)S1Pの直接結合によるaPKCの活性化はどの様な立体構造変化を伴うものなのか、の2点が残されていました。これらが明らかになれば、アポトーシスが関わる特定の疾患に対する、S1P-aPKC立体構造情報を基にした分子標的薬開発の道が開けます。そこで本研究グループは、in silico立体構造シミュレーションと細胞イメージングの技術を組み合わせ、上記問題提起の解明を目指しました。
研究の内容
©Taketoshi Kajimoto, Science Signaling, 2026 (DOI: 10.1126/scisignal.adw7297)(CC BY)。
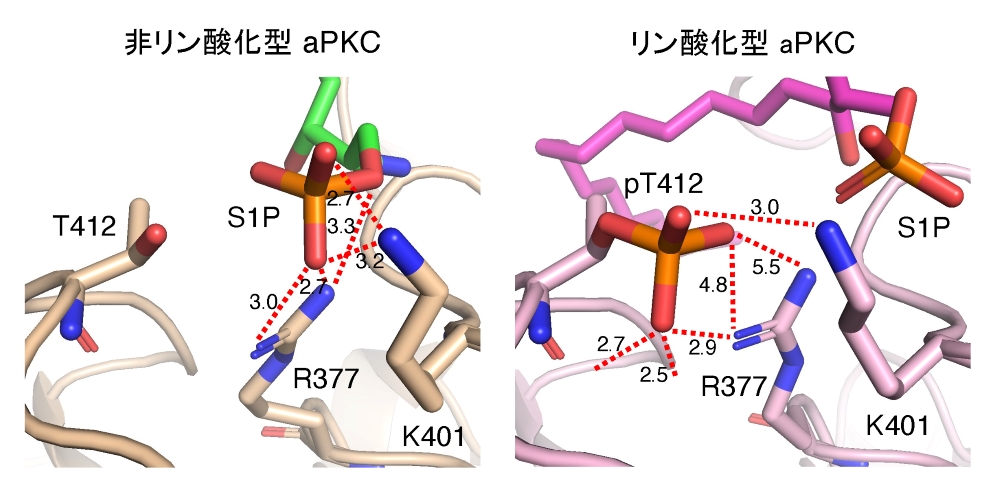
本研究グループは、先行論文において明らかにしたaPKCのS1P結合領域について詳しく解析する中で、結合したS1Pの近傍に、aPKCのリン酸化修飾としてよく知られるホスホイノシチド依存性プロテインキナーゼ1(PDK1)によるリン酸化部位が存在しており、このリン酸化のリン酸基とS1Pのリン酸基との間で、重大な立体障壁が生じていることを発見しました。
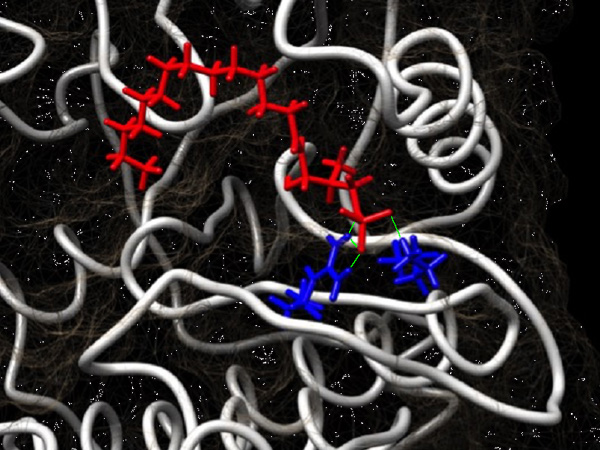
そこで、In silico誘導適合ドッキングシミュレーション※8の手法を用いて、リン酸化状態のaPKCとS1Pとの結合を解析したところ、やはりリン酸化状態のaPKCではS1Pのリン酸基は本来の結合部位から遠く追いやられていました(図2)。
またさらに水素結合※9の解析から、本研究グループが過去に明らかにしたS1Pの結合に必須のアミノ酸※10残基であるアルギニンとリジンが、aPKCリン酸化のリン酸基に奪われる状態となっていることが分かりました(図2)。
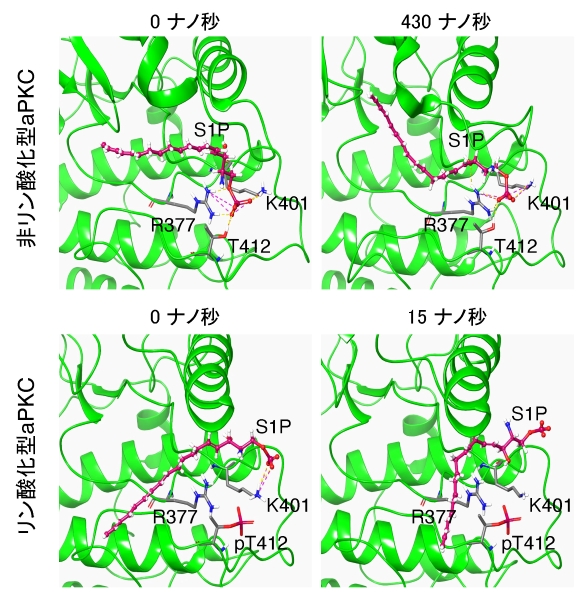
さらに、このS1Pのリン酸基とリン酸化aPKCのリン酸基との競合現象の妥当性を評価するために、分子動力学シミュレーション※11の手法を用いて解析を行いました。図2のドッキングシミュレーションの結果を開始点として、500ナノ秒間のシミュレーションを行ったところ、非リン酸化型のaPKCでは、S1Pのリン酸基はアルギニンとリジンに強く保持されており、シミュレーション全体を通してaPKCから離れることはありませんでした。
©Taketoshi Kajimoto, Science Signaling, 2026 (DOI: 10.1126/scisignal.adw7297)(CC BY)
一方で、リン酸化型のaPKCでは、S1Pのリン酸基はシミュレーション開始後わずか15ナノ秒付近で結合部位から離れてしまい、アルギニンとリジンを上手く捉えられていないことが分かりました(図3)。
さらに細胞レベルでの裏付けとして、本研究グループの先行論文において開発したaPKC活性化センサーを用いて、aPKC活性への影響を検討したところ、aPKCのリン酸化レベルを下げると、S1PのaPKCに対する感受性が増すとともに、aPKCの活性化レベルも増加することが明らかとなりました。
©Taketoshi Kajimoto, Science Signaling, 2026 (DOI: 10.1126/scisignal.adw7297)(CC BY)
次に、S1P-aPKCシグナリングによるアポトーシスのブレーキが、どの様な細胞環境において機能するのか、検討を行いました。
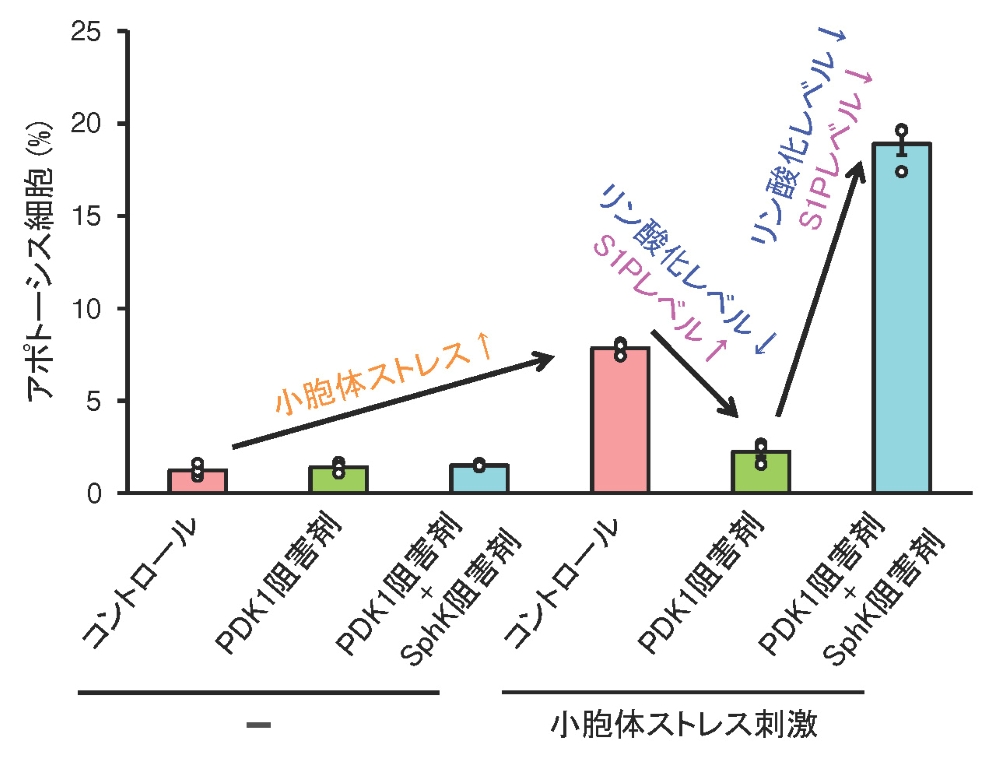
その結果、本研究グループがこれまでに明らかにしていた栄養飢餓環境に加えて、小胞体ストレス刺激によるアポトーシス誘導においても、S1P-aPKCシグナリングがブレーキ役を担うことが明らかになりました。
また実際に、aPKCのリン酸化レベルを下げてS1Pの作用を増強し、aPKCの活性化レベルを上昇させると、小胞体ストレス刺激による細胞のアポトーシスを抑制できることも示されました(図4)。
以上の結果から、S1P-aPKCシグナリングによるアポトーシスのブレーキは、小胞体ストレス環境において効果的に働くことが分かり、さらに、S1Pの直接作用によるaPKCの活性化機構において、S1Pのリン酸基とリン酸化aPKCのリン酸基による場所(アルギニンとリジン)の奪い合いが鍵となることが明らかとなりました。
今後の展開
本研究では、アポトーシスのブレーキ役であるS1P-aPKCシグナリングの社会実装に向けて、小胞体ストレス誘導性アポトーシスにおけるS1P-aPKCシグナリングの重要性を明らかにし、さらにS1PによるaPKC活性化調節におけるS1Pとリン酸化との競合関係を立体構造レベルで明らかにしました。
小胞体ストレスは、糖尿病、神経変性疾患、循環器疾患、がん、高血圧、腎障害などの多様な疾患に関連することが知られており、小胞体ストレスを標的とする各種創薬の試みも、近年世界中で盛んに行われています。今後は、生体レベルでの検証を進めるとともに、これまでに得られた立体構造情報を基に、S1P-aPKCシグナリング調節分子の探索を行うことで、小胞体ストレスが関係する様々な疾患に対する新たな分子標的薬開発への発展が期待できます。
用語解説
※1 スフィンゴシン1-リン酸(Sphingosine 1-phosphate (S1P))
生体の細胞膜を構成するスフィンゴ脂質(スフィンゴミエリンなど)の代謝産物であり、リン酸基とアミノ基を持つ。肌の保湿成分であるセラミドから、スフィンゴシンを経て、スフィンゴシンキナーゼ(SphK)によってリン酸化を受けることで産生する。S1Pは、細胞内外でシグナル分子として働き、細胞増、細胞走化性、神経伝達物質放出など、多様な細胞機能に関与する。S1Pと細胞走化性に関する研究の成果として、多発性硬化症治療薬フィンゴリモドが開発されている。
※2 リン酸化修飾
遺伝子から転写され、翻訳されたタンパク質は、様々な翻訳後修飾を受けることで、その活性が巧みに調節されている。翻訳後修飾の一つとして、リン酸化修飾があり、キナーゼ(リン酸化酵素)と呼ばれる酵素の働きによって、アデノシン三リン酸(ATP)からリン酸基が渡され、共有結合により付加される。リン酸化を受ける主なアミノ酸は、側鎖にヒドロキシ基を持つセリン、スレオニン、チロシンの3つである。リン酸化を受けたタンパク質は、リン酸基の電荷や立体構造の影響により、その構造を変化させるなどして、機能的に活性化または不活性化する。
※3 プロテインキナーゼC(Protein Kinase C (PKC))
1977年に神戸大学にて西塚泰美博士らによって発見された、セリン・スレオニンリン酸化酵素の一種。在来型PKC(conventional:α、βI、βII、γ )(cPKC)、新型PKC(novel:δ、ε、η、θ)(nPKC)、非典型PKC(atypical:ζ、λ/ι)(aPKC)の3つサブファミリー、10種類の分子種に分類される。細胞内シグナリング※10の鍵となるタンパク質であり、カルシウムや脂質などのセカンドメッセンジャーによって活性化される。細胞増殖、細胞死、細胞分化、細胞接着、神経可塑性、神経伝達物質放出など多様な細胞機能に関与し、がん、糖尿病、神経変性疾患など様々な疾患の原因となる。
※4 小胞体ストレス
小胞体内に未成熟または誤って折りたたまれたタンパク質が蓄積し、小胞体のタンパク質品質管理機能が破綻しかけた状態である。この状態になると細胞は、タンパク質合成を一時的に抑え、シャペロンの増加や異常タンパク質の分解を促すことで恒常性の回復を試みる。しかし、小胞体ストレスが強い、または長期化して恒常性を回復できない場合には、細胞死が誘導されることもある。
※5 アポトーシス
細胞が自己の持つプログラムにより計画的に脱落死する現象。細胞の自殺とも呼ばれる。DNAの損傷、栄養飢餓、小胞体ストレスなどにより誘導される。また生体の発生において、例えば人の指などの形成過程にも働く。
※6 分子標的薬
疾患の分子メカニズムに基づき、特定の分子を選択的に制御するよう設計された医薬品。従来の治療薬に比べ、効果の向上や副作用の軽減が期待される。最近では、標的分子の立体構造情報から新規治療薬のリード化合物をより選択的にデザインする手法が開発されている。
※7 細胞内シグナリング
細胞内での分子同士の情報(信号)の流れ。タンパク質とタンパク質の結合、脂質などの小分子とタンパク質の結合、タンパク質のリン酸化修飾などにより、構造変化を起こさせるなどして情報(信号)を伝える。1つの分子が多数の分子へ信号を渡し、ソーシャル・ネットワーキング・サービス(SNS)のように情報を拡散させることで、微弱なシグナルを大きなシグナルへと増幅する働きがある。内部の遺伝的要因や外部からの環境要因により、細胞内シグナリングの恒常性が損なわれると、様々な疾患が発症する。
※8 誘導適合ドッキングシミュレーション
低分子-タンパク質間相互作用における複合体の安定構造を、計算により推定する手法である。通常のドッキングシミュレーションでは、タンパク質の構造を剛体として固定し、低分子のみに柔軟性を持たせて計算を行う。一方で誘導適合ドッキングシミュレーションでは、低分子とタンパク質の両方に柔軟性を持たせ、お互いが結合に適した形状へと誘導適合することで、より実際の結合様式に近いドッキング計算が行われるため、高精度な分子構造情報の取得が可能となる。
※9 水素結合
タンパク質のアミノ酸主鎖同士、側鎖同士、側鎖と主鎖、あるいはタンパク質と低分子化合物などの間に水素結合が形成される。これらの相互作用は、タンパク質の立体構造の形成と維持、タンパク質の調節に関わる低分子化合物の結合、酵素反応における基質結合などにおいて重要な役割を果たす。
※10 アミノ酸
20種類のアミノ酸が存在し、遺伝子の設計図通りに連結されることでタンパク質を構成する。荷電アミノ酸の分類では、正の電荷を持つアミノ酸(アルギニン、リジン、ヒスチジン)、負の電荷を持つアミノ酸(アスパラギン酸、グルタミン酸)、電荷を持たないアミノ酸に分類される。
※11 分子動力学シミュレーション
原子間に働く力を計算し、ニュートンの運動方程式に基づいて原子や分子の動きを時間的に追跡する計算手法である。タンパク質などの構造ゆらぎ、立体構造変化、リガンドとの相互作用、水素結合の変化などを原子レベルで解析することができる。ドッキングシミュレーションで得られる構造は結合の一瞬の姿にすぎないため、その構造を出発点として分子動力学シミュレーションを行うことで、結合が本当に安定しているかどうかを時間の流れの中で確認することができる。分子標的創薬にも活用されている。
謝辞
本研究は、文部科学省、アメリカ国立衛生研究所、神戸大学、およびカリフォルニア大学サンディエゴ校の支援を受けて、神戸大学-カリフォルニア大学サンディエゴ校間の学術交流協定の一環として行われました。
論文情報
タイトル
DOI
10.1126/scisignal.adw7297
著者
Taketoshi Kajimoto, Ambuj Srivastava, Jing Zhang, Taro Okada, Jing Yang, Susan S. Taylor, Rommie E. Amaro, Alexandra C. Newton
掲載誌
Science Signaling
報道問い合わせ先
神戸大学企画部広報課
E-Mail:ppr-kouhoushitsu[at]office.kobe-u.ac.jp(※ [at] を @ に変更してください)